 正版
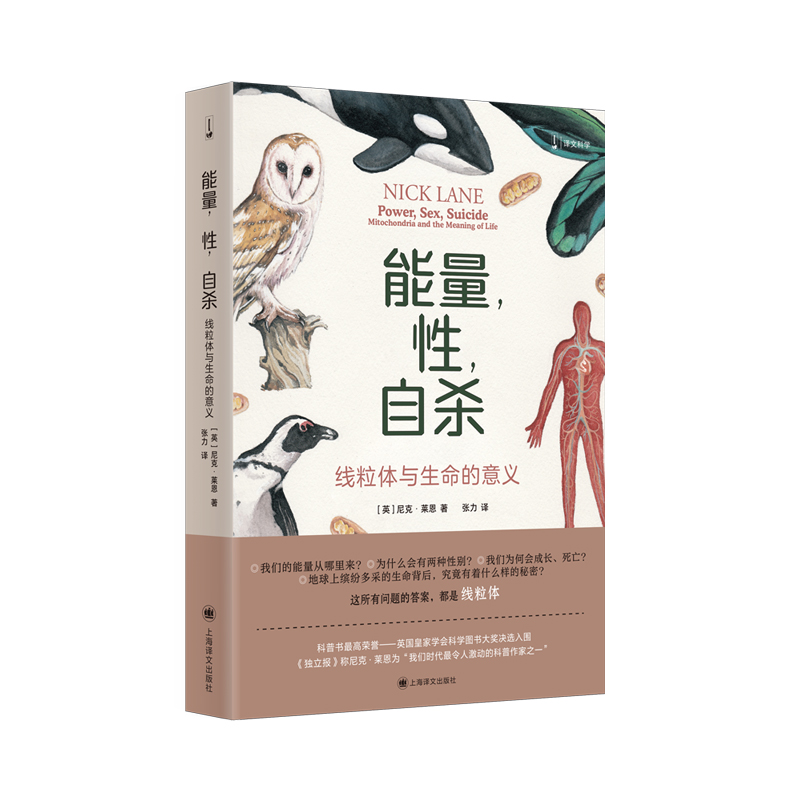
能量,性,自杀(译文科学)
- 书名
- 能量,性,自杀(译文科学)
- 作者
- [英]尼克·莱恩著
- 出版社
- 上海译文出版社
- 出版时间
- 2022-12-01
- ISBN
- 9787532790661
- 货号
- 1202898007
- 品相
- 全新
- 分类
- 涉及古代·科技
- 书名
- 能量,性,自杀(译文科学)
- 作者
- [英]尼克·莱恩著
- 出版社
- 上海译文出版社
- 出版时间
- 2022-12-01
- ISBN
- 9787532790661
- 货号
- 1202898007
- 品相
- 全新
- 分类
- 涉及古代·科技
内容简介▼
人类总是仰望星空,想知道我们为什么会在这里,我们是否在这个宇宙中是孤独的。我们问为什么世界充满了动植物,这一切没有发生的可能性有多大?我们来自何方,我们的祖先是谁,我们的命运将是怎样?
对生命、宇宙和一切的问题的答案神秘而简短:线粒体。
因为它告诉我们分子是如何在我们的星球上产生生命的,为什么细菌会主宰这个星球这么长时间。
它告诉我们个真正复杂的细胞是如何形成的,以及为什么从那时起,地球上的生命就沿着复杂性斜坡上升到如今我们周围的繁荣景象。
它向我们展示了为什么燃烧能量的温血生物会崛起,冲破了环境的枷锁;为什么我们有性行为、有两种性别、有孩子,为什么我们必须坠入爱河。
它还向我们展示了为什么我们在这片苍穹下的日子是有限的,为什么我们必须终变老和死去。它们也向我们展示了,怎样做才能改善我们的晚年生活,以避开身为人类的诅咒———老化的痛苦。
就算它没有告诉我们生命的意义,它至少能让我们理解生命为何是这般模样。
如果这都没有意义,那这世界上还有什么是有意义的呢?
编辑推荐▼
我们的能量从哪里来?为什么会有两种性别?我们为何会成长、死亡?
地球上缤纷多彩的生命背后,究竟有着什么样的秘密?
这所有问题的解答,都是——粒线体
科普书荣誉——英国皇家学会科学图书大奖决选入围
《独立报》称尼克•莱恩为“我们时代令人激动的科普作家之一”
【内容简介】
作者简介▼
尼克•莱恩(Nick Lane)
英国演化生化学家,也是英国伦敦大学学院的荣誉教授,作家,英国伦敦大学学院遗传学、演化和环境系的演化生物化学教授,伦敦大学学院线粒体研究学会的创始成员,并领导了该学院关于生命起源的研究计划。
莱恩曾获得2015年生物化学协会奖,2016年皇家学会迈克尔•法拉第奖,并在《自然》《科学》和《细胞》等国际期刊上发表过80余篇论文。
莱恩写过四本关于进化的书籍,被翻译成25国语言。《独立报》称他为“我们时代令人激动的科普作家之一”。
【媒体评论】
充满令人吃惊的见识,同时也诉说了自然及生命的起源。
——《经济学人》年度好书
连恩的力作和许多议题都密切相关,从天体生物学(探讨宇宙间复杂生命的共通性),到根本的问题(生命的起源),乃至于千古大问(是否有可能在一两个世纪内延长人类的寿命?)。这样的一本书无法赋予生命意义,却以一种前所未有的连贯性,解释了生命的运作、理路和内在逻辑。
——《展望杂志》
大胆!书中提出了至少两个可以验证的重大原创假设,这些部分有资格被视为手文献。本书是为每一位对二十一世纪科学中深刻的问题感到兴趣的读者而写的,其中心思想的论述清晰有力,严肃而影响深远。它提供了一个新的切入点,说明为何我们存在于此。请务必一读。
——《自然》
现代生物学必须诉说的故事中,有意思的一则。
——《卫报》
有趣又好读。连恩完成了一项艰巨的任务,他在这个复杂的领域中撷出精选的层面,并使之浅显易懂;他应用了许多巧妙的比喻,引人入胜。
——《科学》
我不相信会有人读过本书,却没有为生物建构机制的奇巧、复杂,以及惊险程度感到惊讶。在本书中,连恩欣喜地向我们揭示了这些秘密,相信阅读本书的读者也会感受到和他相同的心情。
——《大众科学》
非常发人深省的一本书。作者对这个领域的知识令人印象深刻,他探讨演化学、细胞生物学、族群生物学、遗传学、生物能量学、幂次定律和生物复杂性,以上仅是列举了它所涵盖主题的一部分。这些数据更继而导引出了合理的结论……值得一读。
——《临床研究期刊》
穿越地球上所有生物之地理以及历史的欢快旅程。我不禁嫉妒起作者的大胆、雄心、博学、透彻的推论,和写作风格。
——《粒线体生理学协会评论志》
连恩以透彻而有说服力的方式传达了他的论点。在这个勉强将争辩包装成伪科学的年代,看到他对其他论点的尊重,聪明的读者在阅读时必会感到耳目一新。
——《查尔斯顿信使邮报》
本书严肃而学术,但读来可亲,不过分专业。连恩在论述时充满热情……当代科学界罕见的勇敢企图:从各个不同领域搜集夹缠不清的数据,将它们编织成可以统合解释现有现象的图像。
——《微生物杂志》
你将会被引领前往一场超凡之旅,从时间深处直到现在,乃至于死神统治的场所。阅读本书是一场脑力激荡,可能会为粒线体的研究注入活力。
——《EMBO报导》
透过一位勇于思考,且是用力思考的作者之笔,愉快地拜访了数名当代生物学的先驱者。
——《纽约科学院新知杂志》
令人印象深刻,好读、刺激而且很有说服力。这是本让人兴奋的非凡作品。
——《TLS》
前言▼
生物学研究,如何步入“知天命”之年
中国科学院动物研究所 邹征廷
如果把每个自然科学学科都看作一个人,那么学科的发展也仿佛人的一生。得益于19世纪生物演化和遗传学理论的奠基,以及分子生化技术的飞跃,生命科学在20世纪“三十而立”,确立了学科理论框架。而世纪之交的基因组测序技术的应用,实现了能解决很多具体生物学问题的范式转移,直到今日,人类可以说对任何生命现象的具体机制能够做到“四十而不惑”。那么,自然而然的问题是,我们应该如何继续发展生物学研究,做到“五十而知天命”?在我看来,尼克•莱恩博士的这本《能量,性,自杀》,给出了一些实质性的线索和方向。
想要知道生物学“天命”的,肯定不止我一个人。2001年人类基因组计划草图完成的时候,年龄还小的我从电视新闻里次听到了“碱基”这个词,并震惊于随处可见的动物植物背后,居然有如此复杂难懂的概念。初中时,我着迷于物理——能用简洁定律描述世界的“万物之理”,是初谙世事的“中二少年”合适的理想。而到了高中,我在生物课本里与当年的“碱基”重逢,再一次被生命系统的复杂机制所震撼。在背过了遗传定律和分子生物学知识,了解了“是什么”(What)之后,我希望知道复杂生命背后的“为什么”(Why)和“如何”(How),这也许是我研究生物学的初动力。
然而大学课程大部分时候是在告诉我,生命系统的细节还可以更复杂、更超乎想象。有句话流传很广:“生物学的定律,就是所有定律都有例外。”且不论这句话里的逻辑问题,它反映了生物学专业学生的普遍困惑;甚至有人说,生物是文科,学好生物主要是要背书,记住零零碎碎的生化反应、基因和通路。
对于我自己来说,这种困惑在进入演化生物学领域后有所缓解。生物学家恩斯特•迈尔认为演化理论提供了生物学中的Why和How,也就是生命系统之所以如是的“终极原因”(ultimate cause)。演化生物学家杜布赞斯基有名言道:“没有演化之光照耀,生物学的一切都毫无道理。(Nothing in biology makes sense except in the light of evolution.)”但是,很多生物学家也往往略带戏谑地把这句话反过来——没有生物学之光照耀,演化研究的一切都毫无意义——为什么这么说呢?
到目前为止,演化生物学的核心是建立在自然选择和中性学说等理论框架下的数学模型,在描述基因组(也就是四个“碱基”字母排列而成的序列)的演化规律、追溯物种分化历史(即构建系统发育历史“演化树”)等方面已经非常成功——基因组演化的数学规律,来源于碱基序列和蛋白质序列变化的生物化学规律,这些相对简单的规律不管在细菌中还是人类中都大同小异。
然而,我们熟知的自然选择等演化驱动力,其本质是千万种不同的环境因素,对生物体生存繁衍效率的影响。一方面,环境因素可能是物理的、化学的乃至来自其他生物的,复杂多样;另一方面,这些因素又是施加在生物体本身,也就是所谓“表型”上,而不是针对基因组蓝图。静止、一维的基因组蓝图,如何展开成为运动着的三维生命系统,这个“基因型—表型映射”的鸿沟,现代生物学还远未填平。大部分的演化生物学研究,关注于对生物多样性的解释,即个别物种如何适应其生存的具体环境,而对于多样性背后的“终极原因”,例如生命演化为关键的那些表型变化——真核细胞、有性繁殖、多细胞生物发育等等——如何发生以及由什么环境因素驱动,我们大多数人仍然只有模糊的概念。
在本书中,莱恩博士试图为这些关键表型的适应性演化事件提出一个统一而简单的驱动因素解释,那就是能量,以及其代言人——线粒体。
在“用统一的规律描述研究对象”这条现代自然科学发展之路上,物理学显然比生物学要领先不少。有关能量守恒和转化的三条热力学定律,可能算得上是物理学中重要的“终极理论”之一。1944年,薛定谔正是基于热力学第二定律,在《生命是什么》一书中指出生命系统消耗能量获取有序(即“负熵”)的本质。因此,无论演化出怎样的多样性,生命系统都必须吸收能量、利用能量。
本书在部分就指出了两个没有例外的生物学规律: 所有生物都通过生物膜两侧的质子梯度来产生可用的能量;所有的真核生物都有线粒体。随后,好像电影中的主角逐渐揭露巨大的阴谋一样,作者利用几条跟线粒体能量转化相关的简单事实,向我们展示了复杂生命演化过程中为重要的几个Why和How。
以真核细胞的起源过程为例: 在科研中,证明两个事件之间确定的因果关系比发现二者的相关性要更有挑战,也更令人信服。林恩•玛格利斯的内共生学说提出,真核生物细胞中的线粒体来自被其祖先吞噬的α变形菌。本书则进一步指出线粒体是复杂的真核生物产生的充分必要条件: 细菌的能量产生于其细胞膜上,细胞体积的增大会带来单位体积能量产生速率的下降,体积受限于此的细菌不可能包含足量的遗传物质来指导复杂的生命活动;而线粒体带来的能量产生机制的内化,不仅解除了细胞的体积限制,还给予细胞“挥霍”能量合成遗传物质、运动捕食的机会,成就了复杂的真核细胞。不仅如此,共生起源的线粒体能够在演化中精简其基因组,逐渐形成独立于细胞核的线粒体基因组,虽然仅包含呼吸作用的核心元件,却是动态调整呼吸作用速率、避免自由基堆积破坏细胞的必要“自治”;而没有经过共生事件的细菌则不可能从无到有演化出这种“自治”,也就不可能自己产生内化的能量产生机制了。因此,有且只有通过线粒体共生,真核细胞的复杂性才有可能在演化中出现。
进一步的论述听起来更像是线粒体在成功入驻真核细胞之后的“一盘大棋”: 由于停滞的呼吸作用会产生对细胞结构尤其是遗传物质的破坏,线粒体运行的核心策略是保持整条呼吸链不停运行,哪怕一部分能量变成热量散失掉也无伤大雅——因而产生了温血动物;在单细胞真核生物中,寄居细胞内的线粒体不希望宿主坏掉,因而在细胞发生损伤时促进其与另外细胞的融合修复——因而产生了性;而在多细胞生物中,同样的线粒体化学信号则启动细胞的凋亡,避免不受控的细胞增殖,并且决定了多细胞生物体细胞和生殖系细胞必须隔离开来;线粒体和细胞核基因的演化速率迥异,但在同一个个体中又必须互相兼容,这决定了性别的数量为二,只有一种生殖细胞可以携带线粒体……
后,既然已经谈到了细胞的凋亡,本书自然也指出了我们作为多细胞生物的死亡与线粒体和能量之间的关系: 随着高突变率带来的基因突变增加,细胞中的无缺陷线粒体越来越少,能量产生效率的下降终导致细胞凋亡,器官衰竭。相应地,作者也给出了延年益寿的灵丹妙药,那就是降低呼吸链中自由基泄漏水平。“自由基”可能是普通大众在生活中常常会听到的字眼,作为能破坏细胞结构的高反应活性基团,它通常出现在各种抗氧化剂类保健食品的宣传中;但是吃进胃里的抗氧化剂,无助于封堵小小线粒体膜上透过的自由基。从“减少自由基”的角度出发,似乎减少对身体和细胞的使用、避免消耗和“磨损”,才是长寿之道。然而,本书指出了我们作为“负熵体”的宿命: 自由基并不是罪人,而是重要的能量调节信号,不同物种的自由基泄漏量与其运动能量需求相匹配,反而是鸟类和蝙蝠这类因飞行而有高能量需求的生物,演化出了更低的自由基泄漏量,因此相对同样条件的陆生哺乳类来说寿命更长。“生命在于运动”,诚不我欺。
事实上,演化从来不是一味的“更高更快更强”抑或是“活得更久”,而是以功能与环境“刚刚好”的匹配为目标。究其终极原因,也可以说是能量: 生物体为了功能更强总要耗费更多能量,如果不能“变现”成生存的优势,这种功能增强就难以在自然选择中保留下来。因此,我们今天看到的生命形态和现象,可以说都是在千万年的演化中经历了精打细算,每一点能量都得到了利用,而不同的能量利用策略,也造就了万千的生物多样性。
经典的自然纪录片中少不了食肉动物捕猎食草动物的震撼场景,其本质是能量的消耗战。采用短跑追猎的猫科动物往往选择与自己体型匹配的猎物来弥补相应的能量消耗: 猎豹捕食羚羊,狮子捕食更大体型的斑马。看似威风的猎豹,因为追求速度而身材苗条,没有多少能量储备,日常处在饿死的威胁中,必须有策略地在激烈的捕猎中分配能量;一次奔跑追逐的失败,或者一处拖后腿的伤痛,就意味着失去生命。而其猎物瞪羚以跳高跳远著称,甚至会用原地跳高来向猎豹进行“武力炫耀”,表明自己充足的能量储备,劝对方不要白花心思。
能量是演化军备竞赛中的永恒主题。猫科的近亲犬科动物,采取了不同的能量策略,以良好的耐力进行长距离追猎和骚扰,拖垮能量转化效率更低的食草动物。在海洋和天空中,动物们也同样以不同的能量策略各居其位: 在温暖的热带海洋,鲨鱼等冷血的捕食者得以维持肌肉的反应灵活性;而裹着厚厚脂肪的海生哺乳类和企鹅,则以其内温性的优势,在高纬度的冰冷海水中成为优势的捕猎者。长距离飞行的鸟类,擅长储存和代谢脂肪来产生迁徙时持续的能量供给;以雉鸡为代表的短途飞行鸟类,则更多使用糖类代谢来获取疾飞瞬间的爆发力。
至于我们人类自己,从上世纪中期就有理论提出,饮食中肉类比例的增加使得耗能的大脑发育和运行成为可能,促进了人类祖先的智力演化。从农业文明兴起到两次工业革命,对能量的更有效产生和使用是人类文明进步的根本动力。今日,伴随着大数据计算和人工智能的飞速进步,我们发现其能源消耗将会成为继续发展的限制;而可能为我们这个物种提供无限清洁能源的可控核聚变技术,在人们的翘首期盼中逐步接近实现。
本书不仅阐释了真核细胞产生过程的一种理论,也继续向前追溯,提到了依赖膜结构而存在的化学渗透能可能是生命初起源的动力。因此,从“负熵机器”在地球上开始存在,到人类的生存、发展、疾病和衰老,能量或许是制约生命系统发展的重要因素,也应该是我们思考演化乃至生物医学问题的思路和基础。通过这本书,我们能看到作者试图提出生物学理论的“天命”所在: 能量,或者说线粒体的能量产生机制,可以解释很多基本而关键的生命现象为何产生(Why)、如何产生(How)。
当然,作者指出书中很多想法并无具体证据和机制,生命系统的复杂程度也难以仅凭单一因素构建模型、做出预测,但阅读本书让我倍受鼓舞。如前所述,现代生物学研究在还原论思想的指导下,已经能将生命系统的各个层次、各种状态拆解描述得颇为细致;作为生物学科研工作者,或许我们应该更多地以“知天命”的心气,去尝试进一步探究生命系统中的统一规律,而非仅仅是多样性的故事。事实上,本书阐述的很多事实,我已经急不可耐地想要在我关注的演化问题上加以考虑。而作为非专业人士的读者,也可以从阅读莱恩博士思路清晰而又引人入胜的文字中,获得为专业严谨的科学知识和思维逻辑,以及窥探生命“终极原因”的美好体验。
序言
在《银河系搭车客指南》中,福特•大老爷花了15年搜索资料以修正指南中关于地球的词条。词条里原本的用词是“无害的”,而后他冗长的论文被附加在指南里,用以解释为何终修正成了——“基本无害”。我怀疑有太多的新版本遭受着同样的命运,如果不是因为荒谬的编辑上的考虑,也至少是由于内容缺乏有意义的改变。自从《能量,性,自杀》的个版本出版以来已经过去了15年,我抵制任何蹩脚的修改。有人说,甚至达尔文也通过多次修正弱化了他关于《物种起源》的争论,在这当中,他回应批评并有时将他的观点导向了错误的方向。而我更希望我的原著能自圆其说,即使之后被证明是错误的。让我举一个例子说明原因。
这本书是关于线粒体的,线粒体是我们细胞中的一个微小的“发电厂”,它提供了我们生存所需的所有能量和许多我们生存所必需的分子建筑模块。它们起源于约15到20亿年前在宿主细胞内居住的细菌,并保留一个微小但至关重要的基因组。这个线粒体基因组是我们通过卵细胞从我们的母亲那里单独遗传的;而来自父亲的存在于精子中的线粒体基因组,却被破坏了。这种性别不对称在复杂的生命中几乎是普遍存在的,作为两性之间深的区别之一,雌性可以将线粒体传递给后代,而雄性不可以,甚至在微观的单细胞生物中也不行,即使是在这些生物中,两性之间没有任何其他可见的区别。
我们所不太确定的是为什么会是这样。在这本书的第六章,我讨论并提出两种性别使得自然选择能够选择好的线粒体基因——从亲本一方中分离出单一类型的线粒体DNA,并使它“测试驱动”,以观察与新个体细胞核中其他基因的配合情况。但我也注意到这里有一个潜在的问题,因为我们继承了两组核基因,分别来自我们的父母双方,那么如果其中一组核基因与我们的线粒体基因配合默契,而另一组却没有,那又会怎样呢?我觉得,父亲的一些直接与线粒体相关的核基因可能被关闭(或“印记”),从而保证线粒体功能的优化。但是,自从写了这本书之后,我了解到这不是事实,在这种情况下,没有一点证据可以证明父系基因会被打上印记。
这些事情令我耿耿于怀。从那以后,我花了7年时间和伦敦大学学院的一位好同事,安德鲁•波米安科夫斯基,一起研究这个问题,并吸引了几位非常有天赋的学生。我相信我们找到了答案,我们意识到“性”和“两性”有两个不同的目的。性就是在每个人的核基因中产生差异,使我们每个人的基因都是独一无二的。如果我们都是克隆人,我们都可能被同一种致命的疾病消灭,也许是从一台肮脏的电话机上感染的;事实上,个体之间无数的差异意味着我们每个人面对变化的环境,无论是好是坏,都会有微妙的不同,我们中的一些人会比另一些人活得更长。
。。。。。。
【书摘与插画】
第十六节 线粒体衰老理论
生物学领域中自由基研究的先驱德纳姆•哈曼于1972年提出了线粒体衰老理论。哈曼的中心观点很简单: 线粒体是体内氧自由基的主要来源。这种自由基具有破坏性,并攻击细胞的各种成分,包括DNA、蛋白质、脂质膜和碳水化合物。这些损伤大部分可以通过细胞成分的正常更替获得修复或替换,但受损伤严重的部位,明显的就是线粒体自身,很难通过食用抗氧化剂来获得保护。因此,哈曼说,衰老和退行性疾病的发病率应该由线粒体的自由基泄漏率,再加上细胞固有的保护或修复损伤的能力共同决定。
哈曼的论点建立在哺乳动物代谢率和寿命之间的关系上。他明确地将线粒体标记为“生物钟”。他说,本质上,代谢率越高,耗氧量就越大,因此自由基的产生量就越高。我们将看到这种关系通常是正确的,但不总是这样。这项限制性条款可能看起来微不足道,但它已经使整个领域困惑了一个世代。哈曼提出了一个完全合理的假设,但事实证明这是不正确的。不幸的是,他的假设已经与一般理论纠缠在一起。推翻这个假设并不能推翻哈曼的理论,但它确实推翻了他重要和广为人知的预测——抗氧化剂可以延长生命。
哈曼这项有道理但令人困惑的假设是,从线粒体呼吸链泄漏的自由基比例是恒定的。他假设,泄漏基本上是细胞呼吸机制不受控制、不可避免的副产品,这与细胞呼吸机制中电子沿着呼吸链的传递并需要分子氧是并行的。理论上而言,这些电子中的一部分不可避免地会逃脱呼吸链,与氧反应形成破坏性的自由基。如果自由基以固定速率泄漏(假设是总流通量的1%),那么总泄漏量就取决于耗氧量的速率。代谢率越高,电子和氧气的流通越快,而自由基的泄漏也会越快,即使实际泄漏的自由基的比例永远不变。所以代谢率高的动物产生自由基的速度也快,因此动物的寿命短,而代谢率低的动物产生自由基的速度也慢,因此可以活得更久。
在第四章中,我们看到一个物种的代谢率取决于它体重的2/3次幂。体重越大,个体细胞的代谢率就越慢。这项关系在很大程度上独立于基因之外,而取决于生物学的幂次定律。现在,如果自由基泄漏只取决于代谢率,那么相对于物种的代谢率延长寿命的途径是提高抗氧化剂(或抗逆境)的能力。因此,原始线粒体衰老理论的一项暗示性的预测是长期生存的生物必须有更好的抗氧化剂保护能力。因此,寿命长的鸟类体内一定积蓄了较多的抗氧化剂。因此,如果我们希望长寿,我们必须寻求加强我们自己的抗氧化剂保护能力。哈曼认为,迄今为止,我们没有通过抗氧化剂疗法延长自己寿命的原因(这里的“今”指的是1972年)是因为很难将抗氧化剂送达线粒体。尽管又经历了30多年的屡战屡败,许多人仍然认同这个观点。
这些想法是顽强的,但是错误的,在我看来: 他们如那些靠着倒刺勾在动物毛皮上的植物一般坚持着线粒体衰老理论。特别是认为抗氧化剂可能延长我们生命的想法支撑着一个价值数十亿美元的补充剂产业,但几乎没有确凿的证据来支持这项主张。不同于《圣经》所描述的盖在移动的沙土上的房子,这项主张一直屹立不倒。30多年来,医学研究者和老年学家(包括我自己)在各种衰退的生物系统中投入抗氧化剂,发现它们根本不起作用。它们或许可以纠正饮食中的营养缺陷,并可能预防某些疾病,但是它们根本不影响生物的寿命。
要解释负面证据总是很困难的,那个自鸣得意的俗语总是提醒着我们,“缺乏证据并不代表没有证据”。抗氧化剂不起作用的事实(如果是事实的话)可能总是与送达目标的困难有关: 可能是剂量不对,或是抗氧化剂用得不对,或是分配不对,或是时机不对。要到什么时候我们才能转身离开,说:“不,这不是一个药理学问题,抗氧化剂真的不起作用。”这答案因个人性情而异,也有一些著名的研究者至今尚未离开。但是在20世纪90年代,就整个领域而言方向已经转变了。正如两位著名的自由基权威约翰•古特里奇和巴里•哈利韦尔在几年前所说的:“到了90年代,我们已经很清楚抗氧化剂不是抗衰老和疾病的灵丹妙药,只剩下边缘医学还在兜售这种观念。”
我们有更强有力的理由来挑战抗氧化剂的地位,这些理由都来自比较研究。之前我提到过一项预测说长寿的动物应该具有高水平的抗氧化剂。这似乎一时看上去是真的,但仅仅是在将数据进行了一点无伤大雅的统计分析之后,才是成立的。在上世纪80年代,巴尔的摩国家老龄化研究所的理查德•卡特勒发表了一篇有误导之嫌的报告,说长寿命动物身上比短寿命动物拥有更多的抗氧化剂,问题是他提供了抗氧化剂相对于新陈代谢率的数据,然而这样做掩饰了代谢率和寿命之间更为紧密的联系。换句话说,大鼠的抗氧化剂水平比人类低,但这项表述只有当抗氧化剂浓度除以代谢率时才成立,而大鼠的新陈代谢率是人类的7倍;难怪可怜的大鼠似乎显得无能为力。这一行为掩盖了抗氧化剂水平与寿命之间的真正关系: 老鼠体内的抗氧化剂水平实际上比人类要高得多。十几项独立研究表明抗氧化剂水平和寿命之间的关系是负相关的。换句话说,抗氧化剂水平越高,寿命越短。
也许这种意料之外的关系有趣的方面是,抗氧化剂水平和代谢率水平相平衡。如果代谢率高,那么抗氧化剂水平也很高,推测是为了防止细胞氧化;然而寿命仍然很短。相反,如果代谢率低,抗氧化剂水平也很低,推测是因为细胞氧化的风险较低,但寿命仍然很长。看来,身体不会浪费任何时间和精力去制造更多的抗氧化剂,仅仅是为了维持细胞中平衡的氧化还原状态(即氧化的分子和还原的分子的动态平衡被维持在状态以保证细胞功能的正常运作)。当下的状态也与组织氧气浓度有关。在第四章中,我们注意到在整个动物界,组织氧气水平都保持在3或4千帕斯卡的范围内,这意味着氧气水平和抗氧化剂水平在细胞中取得平衡以保持大致恒定的氧化还原状态。我们将在第七章中看到为什么。短寿命和长寿命动物的细胞主要通过平衡抗氧化剂水平和自由基生成速率来使得细胞保持相似而有弹性的氧化还原状态;但是寿命长短并没有受到抗氧化剂水平的影响。于是我们不得不得出结论: 抗氧化剂几乎与衰老无关。
这些想法在相对于代谢率而言寿命很长的鸟类身上得到了证实。根据线粒体衰老理论的原始版本,鸟类应该具有更高的抗氧化剂水平,但这又不是真的。这种关系是不一致的,但一般来说,鸟类的抗氧化剂水平比哺乳动物低,和预测正好相反。另一个用来测试的例子是热量限制。到目前为止,卡路里限制是被证明能有效延长像大鼠和小鼠这样的哺乳动物寿命的机制。它确切是如何工作的尚存在争议,但它与抗氧化剂水平之间的关系,在不同物种身上的状况也不甚明确。抗氧化剂浓度有时上升,有时下降,没有一致的关联性。上世纪90年代初出现了一项振奋人心的研究,表明通过基因改造使得果蝇在遗传上显出更高的抗氧化酶水平时,果蝇寿命更长,但是实验结果却是不可重复的,至少在原始研究人员的手中(他们对长寿命和短寿命的果蝇品种进行了区分: 较高的抗氧化剂水平可以延长短寿命果蝇品种的寿命。换句话说,它们可以弥补遗传缺陷)。如果从上述的一切可以推出任何确凿的结论,那肯定不是高水平的抗氧化剂可以延长健康、营养状况良好的动物的寿命。
我们一直被抗氧化剂的诱惑困扰,原因很简单: 从呼吸链逃逸的自由基的比例不是恒定的——哈曼的假设是错误的。而自由基泄漏量通常的确反映氧的消耗量,但也可以被上下调节。也就是说,自由基的泄漏率非但不是一种无法控制和不可避免的细胞呼吸副产品,而且在很大程度上是可以控制和避免的。根据马德里康普顿斯大学的古斯塔沃•巴尔哈以及同事们的开创性研究,鸟类之所以寿命很长,因为它们从呼吸链中泄漏出的自由基本来就比较少。因此,尽管消耗大量的氧气,它们也不需要有这么多的抗氧化剂。重要的是,热量限制似乎也以类似的方式起作用。尽管有各种各样的遗传变异,但其中重要的是在耗氧量相似的前提下,限制自由基从线粒体泄漏。换句话说,在长寿的鸟类和哺乳动物中,从呼吸链泄漏的自由基比例都被降低了。
这个答案似乎没有什么攻击性,但实际上很麻烦,并在已建立的衰老演化理论上捅了个窟窿。问题是长寿的动物之所以做到这一点,是通过限制线粒体自由基的泄漏来达成的。因为衰老的速度由基因控制,由此推断在鸟类中一定通过自然选择成功地降低了自由基的泄漏率(据推测在人类中大概也是这样,只是程度较低)。很好。但如果自由基只是破坏性的,为什么老鼠不能也通过限制自由基泄漏来活得更久呢?这似乎没有成本,甚至恰恰相反,老鼠也不需要制造额外的抗氧化剂来防止自身被氧化了。当然,由此带来的好处一定很多,因为长寿的老鼠显然会有更多的时间,留下更多的后代。因此,只要限制自由基的泄漏,老鼠(人类也一样)就可以活得更长且没有成本。
那它们为什么不呢?是因为有什么潜在的代价吗?还是我们对衰老的想法需要彻底修正?通常认为长寿的代价是某种程度上对性的损害。根据纽卡斯尔大学的汤姆•柯克伍德提出的可抛弃体细胞理论,寿命与生殖力是相制衡的: 长寿命的物种每胎的数目往往比短寿命的物种要少,而且繁殖的频率要低得多。这无疑是正确的,至少在大多数已知的案例中的确是这样。原因不太确定。柯克伍德认为,这一原因与个体细胞和组织内资源利用的平衡有关: 当资源被导向促成个体性成熟和提高每胎的后代数目时,就会减少那些用于确保细胞长寿的资源,例如DNA修复、抗氧化酶和抗逆性——毕竟只有这样几种方法来划分有限的资源。巴尔哈的数据对这个想法提出了挑战。限制自由基泄漏不应以降低生殖能力为代价,因为细胞损伤是被限制的,不需要提升抗逆能力——可抛弃体细胞理论中所说的代价被否定了。因此,如果可抛弃体细胞理论是正确的,那么限制自由基泄漏应该有一个隐藏的代价;我们将在后一节中看到,确实存在一个隐藏的代价,它对我们追求长寿具有重要的意义。
为了理解为什么,我们需要考虑哈曼的线粒体理论的另一个预测,这个预测同样也引起了麻烦。这项预测认为,自由基不一定会破坏细胞的构造——而是会被抗氧化剂清除掉——但它们确实会损伤线粒体,特别是线粒体DNA。哈曼实际上只是顺便提到了线粒体DNA,但后来却成为这一理论的基本原则。让我们看看为什么理想预测和残酷现实之间的差距揭示了很多事情的真相。
线粒体突变
哈曼认为,由于自由基的反应性很强,从呼吸链中逃逸出来的自由基应该主要影响线粒体本身——它们应该在产生自由基的地方就地反应,而不是对其他较远的部位造成太大的损害。然后,他敏锐地问,线粒体随年龄增长而逐渐衰退是否“有部分是通过线粒体DNA功能的改变来介导”?这一连串效应应该是这样的: 自由基从呼吸链逃逸,攻击附近的线粒体DNA,引起破坏线粒体作用的突变,随着线粒体的衰退,细胞整体的表现导致衰老的特征。
几年后,西班牙阿利坎特的海梅•米克尔和他的同事更为明确地表述了哈曼敏锐的提问。他们在1980年的构想至今仍然是线粒体衰老理论为人所熟悉的版本,尽管我们将看到,它的某些方面与数据并不完全吻合。构想内容如下: 蛋白质、碳水化合物、脂质等所受的伤害是可以修复的,并没有危险性,除非损伤速度之快是压倒性的(例如像是辐射中毒之后)。而DNA则不同,虽然DNA损伤也可以修复,但有些损伤会改变原始的序列,从而造成突变。突变是可遗传的DNA序列的变异。除非通过随机的反向突变恢复原始序列,或与另一条未突变的DNA进行重组,否则不可能恢复原始的序列。并不是所有的突变都会影响蛋白质的结构和功能,但其中的一些确实会对蛋白质的结构和功能造成影响。通常的情况下,突变越多,产生有害影响的可能性就越大。
理论上,线粒体突变会随着年龄的增长而累积。当突变越积越多的时候,整个系统的效率开始崩溃。通过一组不完善的指令是不可能形成一个完美的蛋白质的,所以一定程度的低效率被植入了这些蛋白质。更糟的是,如果突变影响线粒体的呼吸链,那么自由基泄漏率就会上升,形成愈演愈烈的恶性循环。这种正反馈终会导致一场“错误灾难”,细胞失去对其一切功能的控制。当组织中相当大比例的细胞都落入这样的厄运时,器官就会衰竭,将剩下的功能器官置于更大的压力下。衰老和死亡就是不可避免的结果了。
那么突变影响呼吸链蛋白的可能性有多大?答案是极有可能。我们已经看到,13种核心呼吸蛋白质由线粒体DNA编码,线粒体DNA就锚定在呼吸链旁的线粒体内膜上。任何逃逸的自由基实际上都会与这个DNA发生反应: 突变的发生只是时间问题。我们已经看到线粒体中编码的蛋白质与细胞核中编码的蛋白质有亲密的交互作用,任何一方的改变都会破坏这种亲密关系,并影响整个呼吸链的功能。
目录▼
致谢001
序言001
导言线粒体: 世界的隐秘统治者001
章 有希望的怪物:真核细胞的起源025
节 深的演化鸿沟035
第二节 追寻祖先048
第三节 氢假说064
第二章 生命力:质子动力与生命起源079
第四节 呼吸作用的意义085
第五节 质子动力102
第六节 生命的起源113
第三章 内幕交易:复杂性的基础127
第七节 细菌为何如此简单139
第八节 为什么线粒体使复杂性成为可能158
第四章 幂次定律:尺寸与复杂性上升的斜坡179
第九节 生物中的幂次定律187
第十节 温血革命213
第五章 谋杀还是自杀:个体的艰难诞生225
第十一节 体内的冲突239
第十二节 个体的建立258
第六章 性别之战:史前人类与性别的本质273
第十三节 性别的不对称279
第十四节 史前人类考古的性别启示291
第十五节 为什么有两种性别311
第七章 生命的时钟: 为何线粒体终将杀死我们321
第十六节 线粒体衰老理论329
第十七节 自动校正机的消亡347
第十八节 治疗老化?362
后记374
词汇表386
译后记393
致谢
【前言】